竹节式分布式认知触须
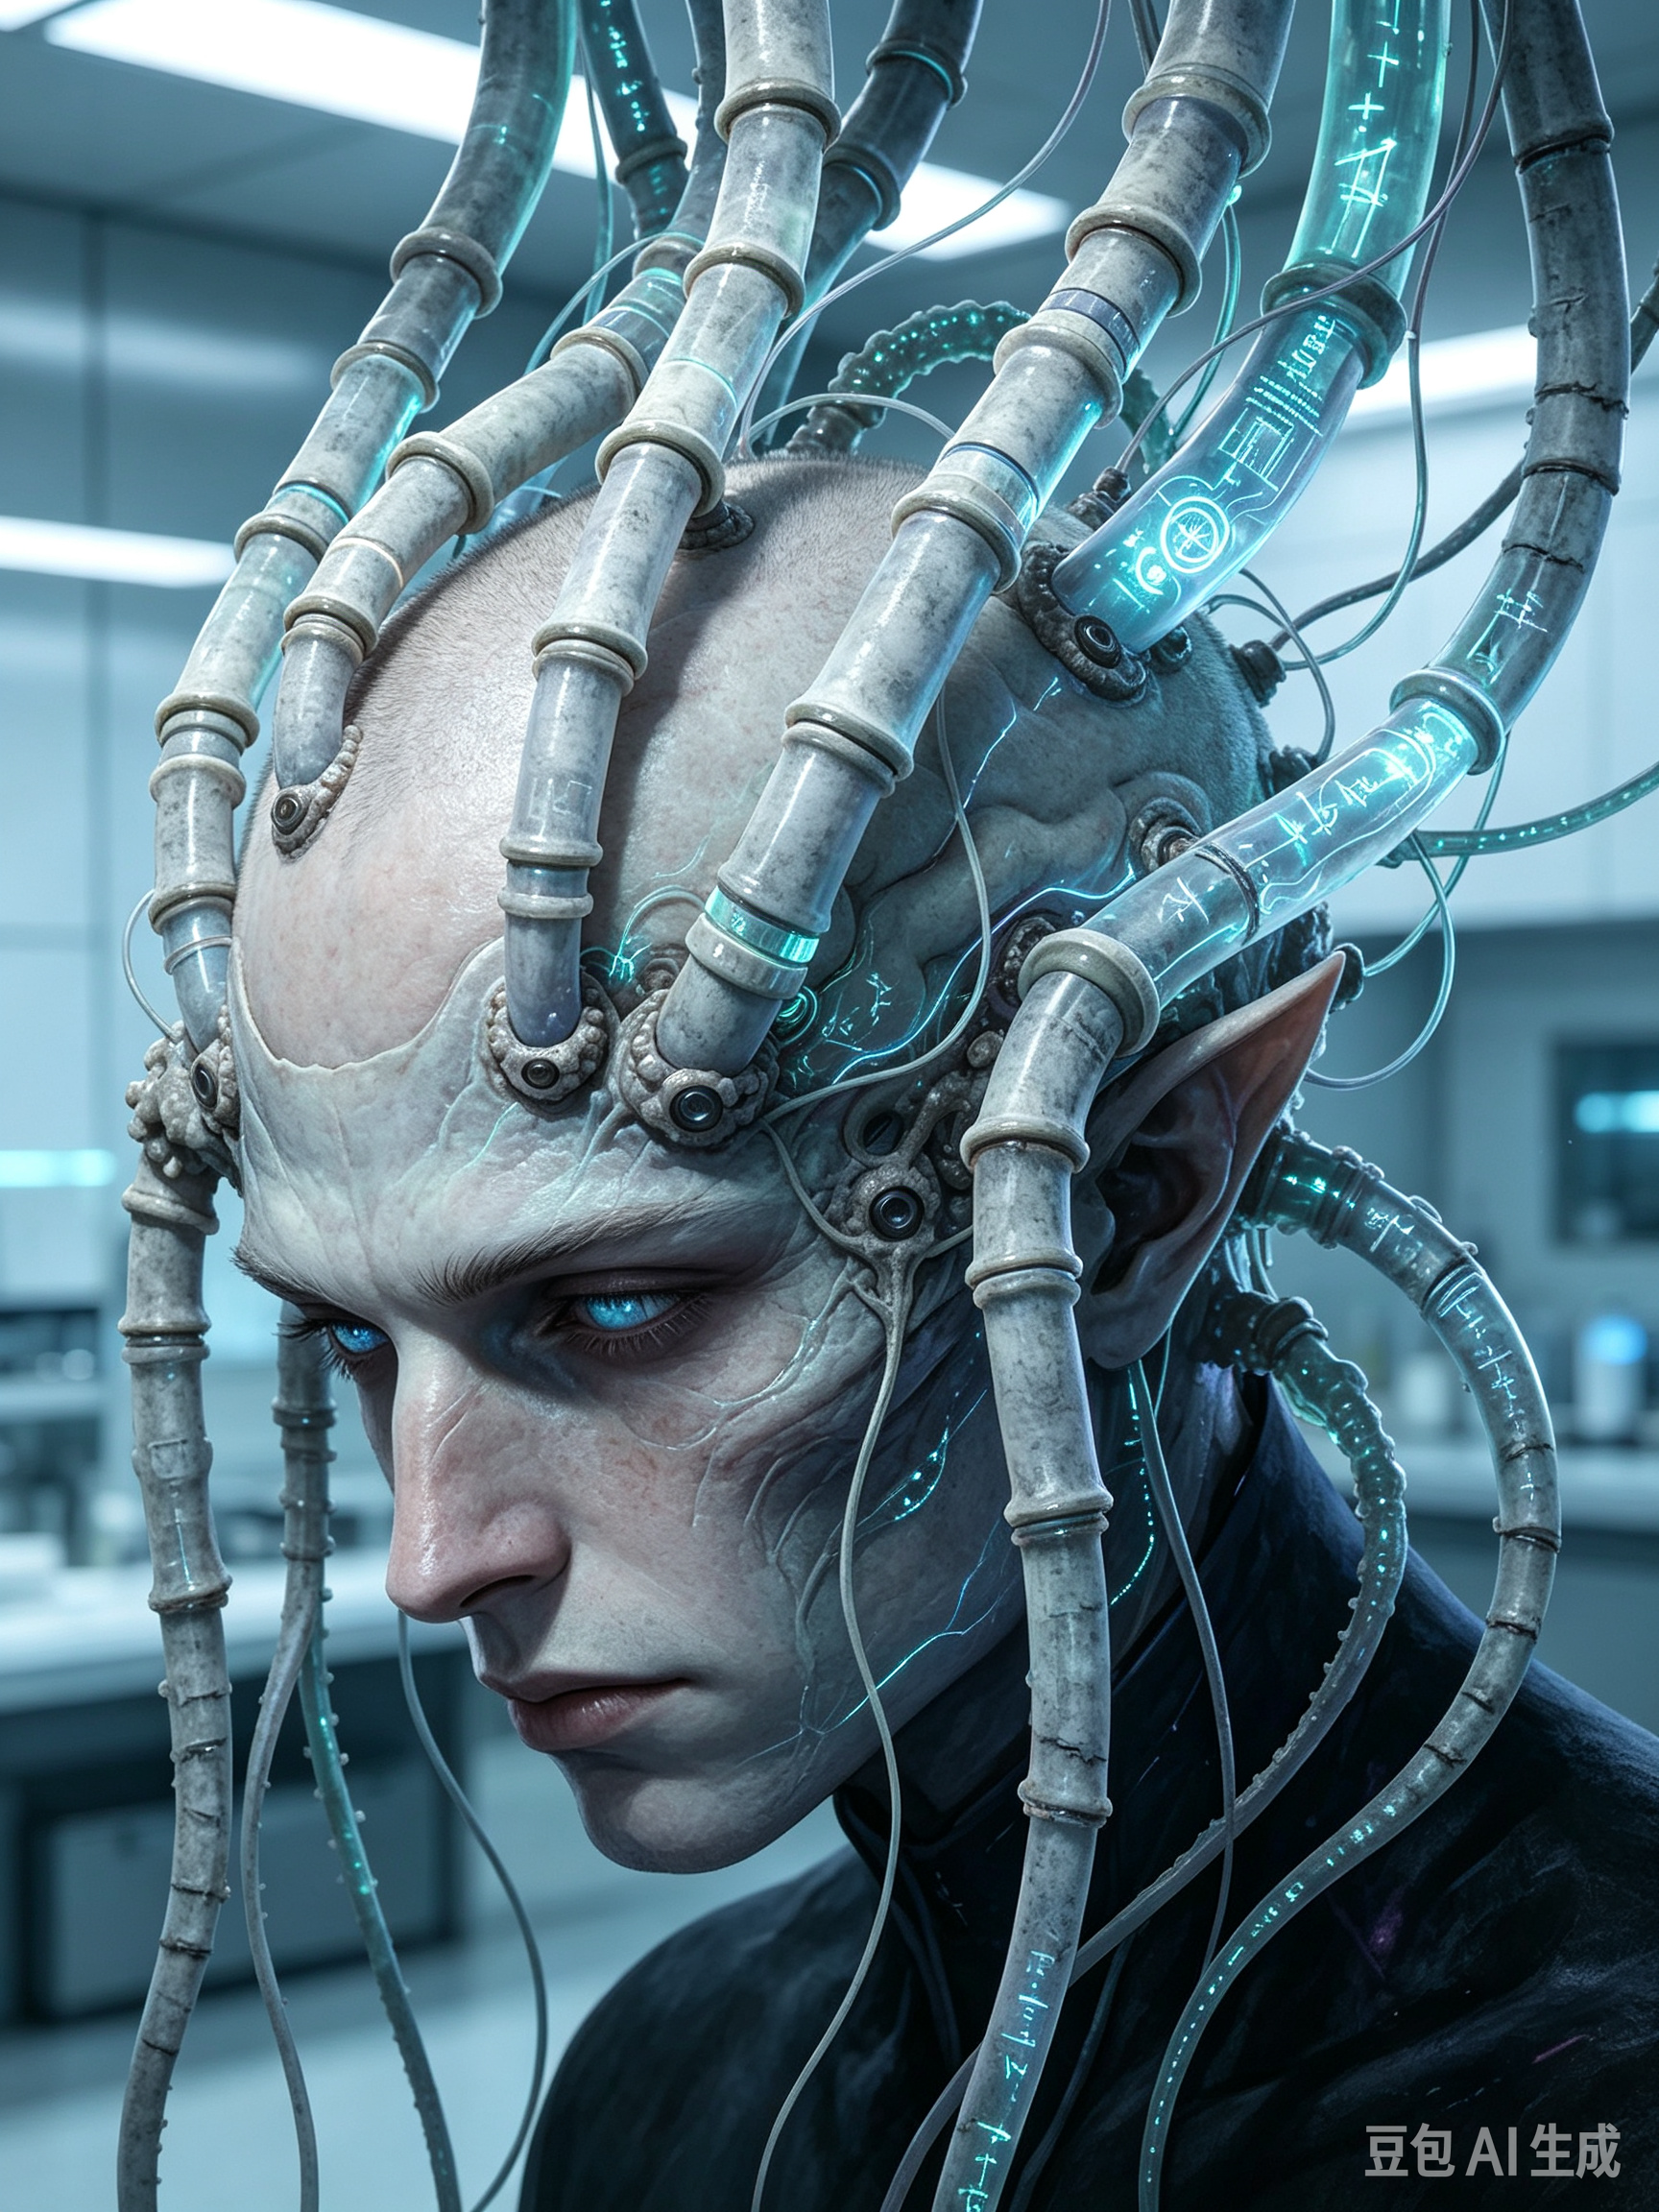
本文以现实生物的发育机制、神经架构、生物矿化通路为基础,构建一套自洽的理论模型,描述一类域外智慧生物的认知器官:从颅顶、颞侧生长而出的竹节状触须,它兼具分布式算力副脑、活体防护结构双重功能。这套器官不是简单的外置肢体,而是与主脑同源共生的认知延伸;其底层发育逻辑,可以依托已知的基因工具箱解释,同时它的认知范式,对中心化意识的定义提出哲学层面的追问。本文作为设定参考,区分 “现实生物学可实现的发育机制” 与 “漫长演化下才可能诞生的认知算力特化”,二者不可混同。
一、现实生物原型与底层基因机制
脊椎动物体内本身存在一套保守的发育调控工具箱,这套工具箱是该器官形态得以成立的基础。
- 附肢发育:HOX 基因簇的位置与分节调控
HOX 基因是两侧对称动物用来划定身体轴向、附肢分段的核心调控序列,在四肢、触角、头角的发育过程中保守存在。牛角的形成,本质就是改变了颅顶区域的发育信号,在颅骨上方激活附肢芽的生长通路,诱导间充质细胞增殖、软骨基质成型,再在表层启动角质化程序National C...。 同理,竹节触须的分节形态,在发育层面可以通过改写 HOX 基因的时序表达实现:在头顶神经上皮区域,异位启动附肢芽,沿着近 - 远轴,梯度排布 Hox 基因,依次划分一节一节的独立单元,节间保留结缔组织与柔性关节,保障弯曲、摆动能力。这一步,在发育逻辑上和牛角、脊椎动物肢体分节同源,不存在原理上的断裂。
- 硬质外壳:生物矿化通路,以牙釉质为原型
脊椎动物自带成熟的生物矿化系统。牙釉质由成釉细胞分泌有机基质,有序引导羟基磷灰石晶体定向沉积,形成人体硬度最高的组织;骨骼、贝壳、牛角,分别对应矿化、角质纤维化两条不同硬化路线。 牛角以角质蛋白为主,韧性强、硬度有限;牙釉质属于无机晶体主导的矿化结构,硬度更高。该触须的基础外壳,复用成釉细胞的矿化逻辑:每一节触须的外层上皮,分化出矿化分泌细胞,在有机蛋白支架上有序沉积羟基磷灰石,形成远超牛角硬度的硬质保护层。 在高阶演化版本,该物种进一步演化出生物冶金通路:矿化过程中可控掺入金属离子,在晶体间隙形成原生生物合金,合金与活体组织共生一体,不是后天装配的甲片。和普通牙釉质不同,这套矿化层下方保留分生干细胞龛,外壳受损后可以持续补充矿化晶体,实现自我修复。人类天然牙釉质在成熟后细胞凋亡,无法修复,是这条演化分支的取舍差异。
- 分布式神经架构:章鱼神经系统的范式参照
章鱼的神经系统,是自然界现成的分布式智能范本。章鱼全部神经元约 5 亿,仅三分之一集中在头部主脑,剩余三分之二分布在八条腕足的轴向神经索与腕神经节内。每一条腕足拥有本地独立的神经处理单元,主脑只下发宏观目标指令,抓取、绕行、触觉感知的细节计算,由腕足神经节就地完成;切断后的腕足短时间内依然可以自主响应刺激,完成抓取动作,各腕神经节之间还存在横向联络纤维,不经过主脑也可以互通信息PMC。 章鱼的分布式副脑,演化方向是运动、感知;而该域外文明的触须,是这套架构的定向重构:每一根竹节触须内部,沿着分节隔离出独立的神经节集群,每一节单元特化为专业化认知副脑,一部分负责符号数学推演,一部分负责时空物理建模,一部分承担长时记忆缓存。主脑作为意识的核心,只负责提出猜想、判断全局方向、整合各个副脑返回的结论;繁琐、长链条的并行推演,下放至各个触须单元独立运算。 主脑与触须根部依靠吸盘状突触簇对接,神经递质、离子信号双向互通,信号协议和原生神经系统同源,不存在生硬的转换壁垒。
二、演化路径的分层推演
需要明确一个边界:长出竹节状、带硬质外壳、带神经束的肉质附肢,在发育机制上具备可行性;但让每一节细胞自发演化出专用生物逻辑算力单元,是极低概率、需要亿万年定向筛选的演化成果,无法依靠单次基因编辑直接完成。 演化分为三个阶段: 第一阶段:原始神经触丝。最初只是颅顶萌发的纤细神经突起,用来感知微弱场信号,只具备感知功能,没有独立计算能力。自然选择偏好感知更敏锐的个体,触丝逐步变长、分节。 第二阶段:本地神经节分化。触丝内部神经细胞聚集,形成独立神经节,具备简单的本地关联运算,类似章鱼腕足的感知 - 动作单元。此时触须可以分担一部分基础信息处理,降低主脑负载。 第三阶段:认知功能特化。在这个文明独有的选择压力下,生存竞争的核心不再是捕猎、防御,而是对世界规则的预判、建模、推演。那些触须神经节可以分化出酶促蛋白逻辑门、分子记忆阵列的个体,拥有更强的推演能力,更容易预判环境、构建理论,获得更高的繁衍优势。历经漫长世代筛选,不同节段的神经单元逐步固定分工:数学单元、物理单元、记忆检索单元,各司其职。外层同步演化出矿化硬壳,在思考之外,赋予物理防护功能。 危险来临之时,一簇舒展的竹节触须可以收拢、盘绕,编织成笼状结构包裹主脑,认知器官同时成为活体护甲。思考与防御,是同一套结构的两种固有本能。
三、基因编辑移植方案(跨物种嵌合)
当该文明掌握基因调控技术之后,可以把这套成熟的发育模板,作为嵌合模块导入其他物种(如人类)。 移植并非直接写入一整套全新的生命蓝图,而是导入外源调控元件:
- 异位激活颅顶附肢芽的 HOX 表达序列,启动触须生长;
- 导入特化的矿化调控基因,让触须外层生成硬质矿化外壳;
- 导入该物种演化形成的生物计算蛋白通路,赋予触须内部神经节的推演能力。
这里存在兼容门槛:宿主原生大脑的神经节律,必须和触须突触信号同步。大量个体移植后,触须能够正常长出,但算力单元无法激活,仅仅是带有神经通路的空壳;只有少数神经节律匹配的个体,主意识可以和触须副脑建立稳定同步,真正调用分布式算力。兼容失败的个体,会出现信号冲突、认知幻觉、逻辑崩溃等神经紊乱。
四、哲学思辨部分:分布式意识的边界
脊椎动物的意识,长期被束缚在单一、封闭的颅腔之内,所有的思考、推演、记忆,都集中在一套中枢网络之中,自我的边界清晰、固定。 而这套竹节触须带来的,是意识边界的重构。 主意识是本源,是提出命题、把握方向的那个 “我”;各个触须副脑是并行的推演分身,它们独立展开分支计算、遍历可能性、排查逻辑矛盾,再把压缩后的结论回流至主脑。在思考的过程中,思绪向外舒展,每一节触须的屈伸,对应一条思维分支的运转。 这里产生一个根本问题:何为自我? 当一部分记忆、一部分逻辑推演,长期由外置的、同源共生的器官承载,主观感受会慢慢消除边界区分。人类习惯区分 “我脑子里想到的” 和 “外部工具给出的答案”;而拥有这套触须的个体,无法分辨一条推论,是主脑原生生成,还是触须副脑演算之后传递回来的结果。 它不是外接的工具,而是延伸的认知器官,如同眼睛、耳朵一样,归属于主体本身。 这套架构同时带来一种新的认知范式:人类的局限,往往不在于没有猜想,而在于单一主脑算力有限,无法并行遍历大量推演分支,漫长的验证过程消耗一生的时间。分布式触须把并行推演的能力赋予主体,人的创造力不再被繁琐的数学、仿真、推导步骤锁死,意识的重心回归到范式突破、提出全新公理与猜想之上。 这也暗含一种文明演化的取舍:中心化的大脑适合快速决断、适应即时生存;分布式认知器官,适合对宇宙底层规则进行漫长、多分支的求索。
五、边界说明(用于设定自洽校验)
- 现实层面:人类目前的基因编辑,仅能调控已有发育通路,无法凭空创造全新的生物计算细胞。生物矿化、HOX 附肢发育、章鱼分布式神经,全部是已观测到的生物学机制;但分节、专精化的生物算力单元,在地球现有生命中尚未演化出来,属于亿万年定向筛选的外星演化成果。
- 功能区分:触须的矿化外壳,负责物理防护;内部神经节集群负责认知运算;节间软组织负责运动、信号传递。三者由同一套发育程序同步生成,不是拼接结构。
- 认知局限:即便拥有分布式副脑,这套器官依然无法凭空诞生颠覆性范式。副脑的所有推演,都建立在主脑给定的公理、前提、边界条件之内;跨体系的、打破原有全部预设的猜想,依然来自主意识本身。